25.9 Stjórnun rúmmáls og samsetningar líkamsvökva
25.9 Stjórnun rúmmáls og samsetningar líkamsvökva
Námsmarkmið
Í lok þessa hluta átt þú að geta:
- útskýrt verkunarhætti helstu flokka þvagræsilyfja
- útskýrt hvers vegna mismunandi vatns- og jónagegndræpi einstakra hluta nýrnapíplunnar er nauðsynlegt fyrir myndun þvags
Þvagtemprandi hormón (ADH), aldósterón og natríumræsipeptíð eru meðal mikilvægustu hormóna sem stjórna vatns- og saltbúskap líkamans. Blóðmissir og ofþornun geta minnkað virkt slagæðablóðrúmmál, en jafnvægisstjórnun þarf að verja bæði rúmmál utanfrumuvökva og osmólalitet hans. Æðaþrenging getur stutt blóðþrýsting innan sekúndna, þorsti eykur vatnsinntöku og hormónakerfi breyta endurupptöku vatns og rafvaka. Nýrun eru aðalframkvæmdarlíffæri þessarar langtímastjórnunar, en þau starfa með hjarta-, æða- og taugakerfi.
Skynjun rúmmáls og þrýstings
Líkaminn hefur ekki einn beinan nema fyrir heildarblóðrúmmál. Háþrýstingsnemar í slagæðum, einkum í hálsslagæðarskútum og ósæðarboga, skynja teygju sem tengist slagæðaþrýstingi, en lágþrýstingsnemar í hjarta og lungnaæðum skynja fyllingu miðlægrar blóðrásar. Hækkaður slagæðaþrýstingur dregur úr driftaugavirkni og eykur slakandi áhrif á æðakerfið, en áhrif á blóðflæði um nýru mótast jafnframt af sjálfstýringu nýrna. Lækkaður þrýstingur eykur driftaugavirkni; við mikla driftaugavirkni herpast nýrnaæðar, gaukulsíunarhraði (GSH) lækkar og útskilnaður Na+ og vatns minnkar.
Lækkaður nýrnaflæðisþrýstingur og minni togspenna í vegg aðrennslisslagæðlings örva renínlosun frá nærgauklafrumum. Beta-1-adrenvirk driftaugaboð og lítil NaCl-afhending til þéttdepils styðja einnig renínlosun. Angíótensín II veldur hraðvirkum æðaráhrifum og örvar aldósterón, sem eykur endurupptöku Na+ í síðari fjærpíplu, tengipíplu og safnrásum. Vatn fylgir aðeins þar sem þekjan er vatnsgegndræp, einkum fyrir áhrif ADH. Prógesterón getur bundist saltsteraviðtaka en verkar yfirleitt fremur sem samkeppnishemill aldósteróns en veikur saltsteri; það veldur því ekki einfaldlega sömu Na+- og vatnssöfnun og aldósterón.
Vöðvafrumur gátta losa gáttanatríumræsipeptíð (ANP) þegar aukin fylling teygir gáttaveggina. ANP eykur natríumútskilnað með beinum áhrifum á gaukul, nýrnapíplur og renín–angíótensín–aldósterón-kerfið; það vinnur því ekki aðeins með því að hamla aldósteróni. Minni endurupptaka Na+ stuðlar að auknum útskilnaði Na+ og vatns og getur lækkað utanfrumuvökvarúmmál og blóðþrýsting. Við lítið fylliálag er losun ANP minni, en áhrif þess eru samhengi- og styrkháð fremur en alfarið horfin.
Þvagtemprandi hormón (ADH), einnig nefnt vasópressín, binst V2-viðtökum í safnrásum og eykur endurupptöku vatns. Við mikinn styrk getur það jafnframt virkjað V1-viðtaka og valdið æðaherpingi, sem skýrir heitið vasópressín. Vasópressín-hliðstæður, til dæmis terlipressín, geta verið notaðar ásamt annarri meðferð við bráðri blæðingu frá vélindagúlum hjá fólki með skorpulifur; það er ekki rétt að lýsa þessari notkun einfaldlega sem meðferð við vélindablæðingu hjá „alkóhólistum“.
Þegar virkt slagæðablóðrúmmál minnkar verulega, oft um 5–10 prósent, verða óosmótísk þrýstings- og rúmmálsboð til ADH-losunar sterk og geta yfirgnæft osmólalitetstjórnun. Hormónið myndast í undirstúku og losnar úr afturhluta heiladinguls. V1-miðluð æðaherping verður einkum við mikinn styrk, en V2-miðluð ísetning akvapóríns 2 í topplæga himnu aðalfrumna safnrása eykur endurupptöku vatns og hjálpar til við að verja blóðrásarrúmmál.
Þvagræsilyf og vökvarúmmál
Þvagræsilyf eykur útskilnað þvags, oft með því að minnka endurupptöku Na+ svo vatn fylgi með osmósu. Koffín getur haft væg, skammtaháð og þolháð þvagræsandi áhrif, en þau skýrast ekki einfaldlega af víkkun nýrnaæða og hækkun GSH. Etanól getur aukið þvagmyndun með því að bæla ADH-losun án þess að þurfa að hækka GSH. Þvagræsilyf eru meðal annars notuð við háþrýstingi og vökvasöfnun. Tíazíðlyfið hýdróklórtíazíð hamlar Na+/Cl−-samferjunni NCC í fyrri hluta fjærpíplu, ekki í safnrás. Við það eykst útskilnaður natríums og vatns.
Osmótísk þvagræsilyf síast í gaukli en eru lítið endurupptekin; þau halda vatni í pípluvökva og auka þannig þvagmyndun. Mannitól er sykuralkóhól sem er gefið í bláæð við afmörkuðum ábendingum, meðal annars til að lækka hækkaðan innankúpuþrýsting, en notkun þess krefst mats á vökva-, rafvaka- og nýrnastöðu. Við illa stjórnaða sykursýki getur síað magn glúkósa farið fram úr endurupptökugetu natríum-glúkósa-samferja (SGLT). Glúkósi verður þá eftir í pípluvökva, veldur osmótískri þvagræsingu og getur stuðlað að hinum klassísku einkennum: miklum þvaglátum, miklum þorsta og aukinni matarlyst.
Stjórnun Na+ í utanfrumuvökva
Natríumsölt eru helsti ákvörðunarþáttur osmólalitetar utanfrumuvökva og heildarmagn natríums í líkamanum ræður miklu um rúmmál hans. Styrkur Na+ í blóðvökva endurspeglar hins vegar fyrst og fremst jafnvægi vatns miðað við natríum, ekki heildarnatríummagn eitt og sér. Langvarandi mikil saltneysla getur aukið blóðþrýsting hjá næmum einstaklingum og stuðlað að vökvasöfnun, en natríumdreyri stafar oftast af hlutfallslegum vatnsskorti fremur en einfaldlega of miklu natríumi. Bjúgur og háþrýstingur eiga sér fjölþættar orsakir og fylgja ekki sjálfkrafa hverri hækkun Na+-styrks.
Heildarmagn natríums í líkamanum er meðal annars stjórnað með renín–angíótensín–aldósterón-kerfinu og natríumræsipeptíðum, en þorsti og ADH stjórna styrk Na+ óbeint með vatnsbúskap (sjá mynd 25.14). Aldósterón eykur virkni ENaC-ganga í aðalfrumum síðari fjærpíplu, tengipíplu og safnrása og eykur þannig endurupptöku Na+. ADH stýrir einkum vatnsgegndræpi safnrása og getur því hækkað eða lækkað styrk Na+ eftir vatnsjafnvægi.
Stjórnun K+ í utanfrumuvökva
Styrkur K+ er um 30 sinnum meiri innan frumna en í utanfrumuvökva. Ekki er þó hægt að gera ráð fyrir einfaldri gagnstæðri reglu milli styrks Na+ og kalíums. Breyting á endurupptöku Na+ getur haft áhrif á seyti K+, en sambandið ræðst af fleiri þáttum. Í aðalfrumum síðari fjærpíplu, tengipíplu og safnrása eykur aldósterón endurupptöku Na+ um ENaC og virkni natríum-kalíumdælu. Við það verður pípluholið neikvæðara og seyti K+ um ROMK- og BK-göng getur aukist. Seytið ræðst einnig af Na+-afhendingu og flæði í fjærhluta píplunnar, sýru-basa-ástandi og styrk K+ í blóðvökva. Við spennumuninn er Cl− yfirleitt endurupptekið fremur en seytt; aukin natríumendurupptaka veldur því ekki sjálfkrafa samhliða seyti bæði kalíums og klóríðs.
Stjórnun Cl−
Klóríð er ríkjandi anjón utanfrumuvökva og dreifing þess tengist náið Na+, rafhleðslujafnvægi, vökvaflutningi og sýru-basa-jafnvægi. Í maga seyta veggfrumur H+ og Cl− í holið, þar sem þau mynda saltsýru sem styður meltingu og varnir. Nýrun stjórna Cl− með flutningsleiðum í mörgum pípluhlutum; stjórnun þess fylgir oft Na+ en er ekki í öllum aðstæðum nákvæm spegilmynd natríumstjórnunar.
Stjórnun Ca2+ og fosfats
Kalkkirtlar skynja styrk jónaðs Ca2+ í blóði. Þegar styrkurinn lækkar eykst losun kalkkirtlahormóns (PTH), sem meðal annars eykur endurupptöku Ca2+ í fjærpíplu og tengipíplu. Þegar styrkur Ca2+ er nægur eða hár minnkar PTH-losun. Þegar styrkur Ca2+ er lágur dregur PTH NaPi-samferjur frá topplægri himnu nærpíplufrumna og minnkar endurupptöku ; fosfatútskilnaður eykst og það getur takmarkað fosfathækkun meðan styrkur Ca2+ er varinn. PTH örvar einnig CYP27B1-miðlaða umbreytingu kalsidíóls í kalsítríól. Kalsítríól eykur frásog Ca2+ og fosfats úr þörmum. Saman samhæfa þessi áhrif kalsíum- og fosfatbúskap.
Stjórnun H+, bíkarbónats og pH
Sýru-basa-jafnvægi byggist á efnafræðilegum stuðpúðum og samhæfðri starfsemi lungna og nýrna. Stuðpúðar, sérstaklega prótín og bíkarbónat , geta bundið eða losað H+ hratt. Ammóníakskerfið er sérstaklega mikilvægt inni í nýrum og þvagi. Lungun breyta styrk og CO2 á mínútum með loftskiptum og stjórna þannig rokgjörnum sýruhluta kerfisins; þau losa ekki fasta sýru. Nýrun endurheimta síað bíkarbónat, mynda nýtt bíkarbónat og skilja út nettósýru á klukkustundum til daga. Seyti H+ í nærpíplu er að mestu tengt endurheimt síaðs bíkarbónats og endurupptöku Na+. Nettóútskilnaður H+ verður einkum þegar jónirnar bindast stuðpúðum í þvagi. A-millifrumur safnrása seyta H+ um topplægar róteindadælur, en B-millifrumur geta seytt bíkarbónati þegar líkaminn þarf að losa basa. Nýrun geta því leiðrétt bæði sýru- og basavanda.
Mestallt síað bíkarbónat er venjulega endurheimt og er því ekki aðalstuðpúði lokaþvags nema meira bíkarbónat sé skilið út, til dæmis við lýtingu. Vetnisjónir sem seytt er í pípluholið bindast stuðpúðum, einkum fosfati og ammóníaki, sem tekur við róteind og myndar ammóníum pH þvags er breytilegt og liggur oft um 4.5–8.0 eftir mataræði, söfnun sýnis og sýru-basa-ástandi.
Stjórnun köfnunarefnisúrgangs
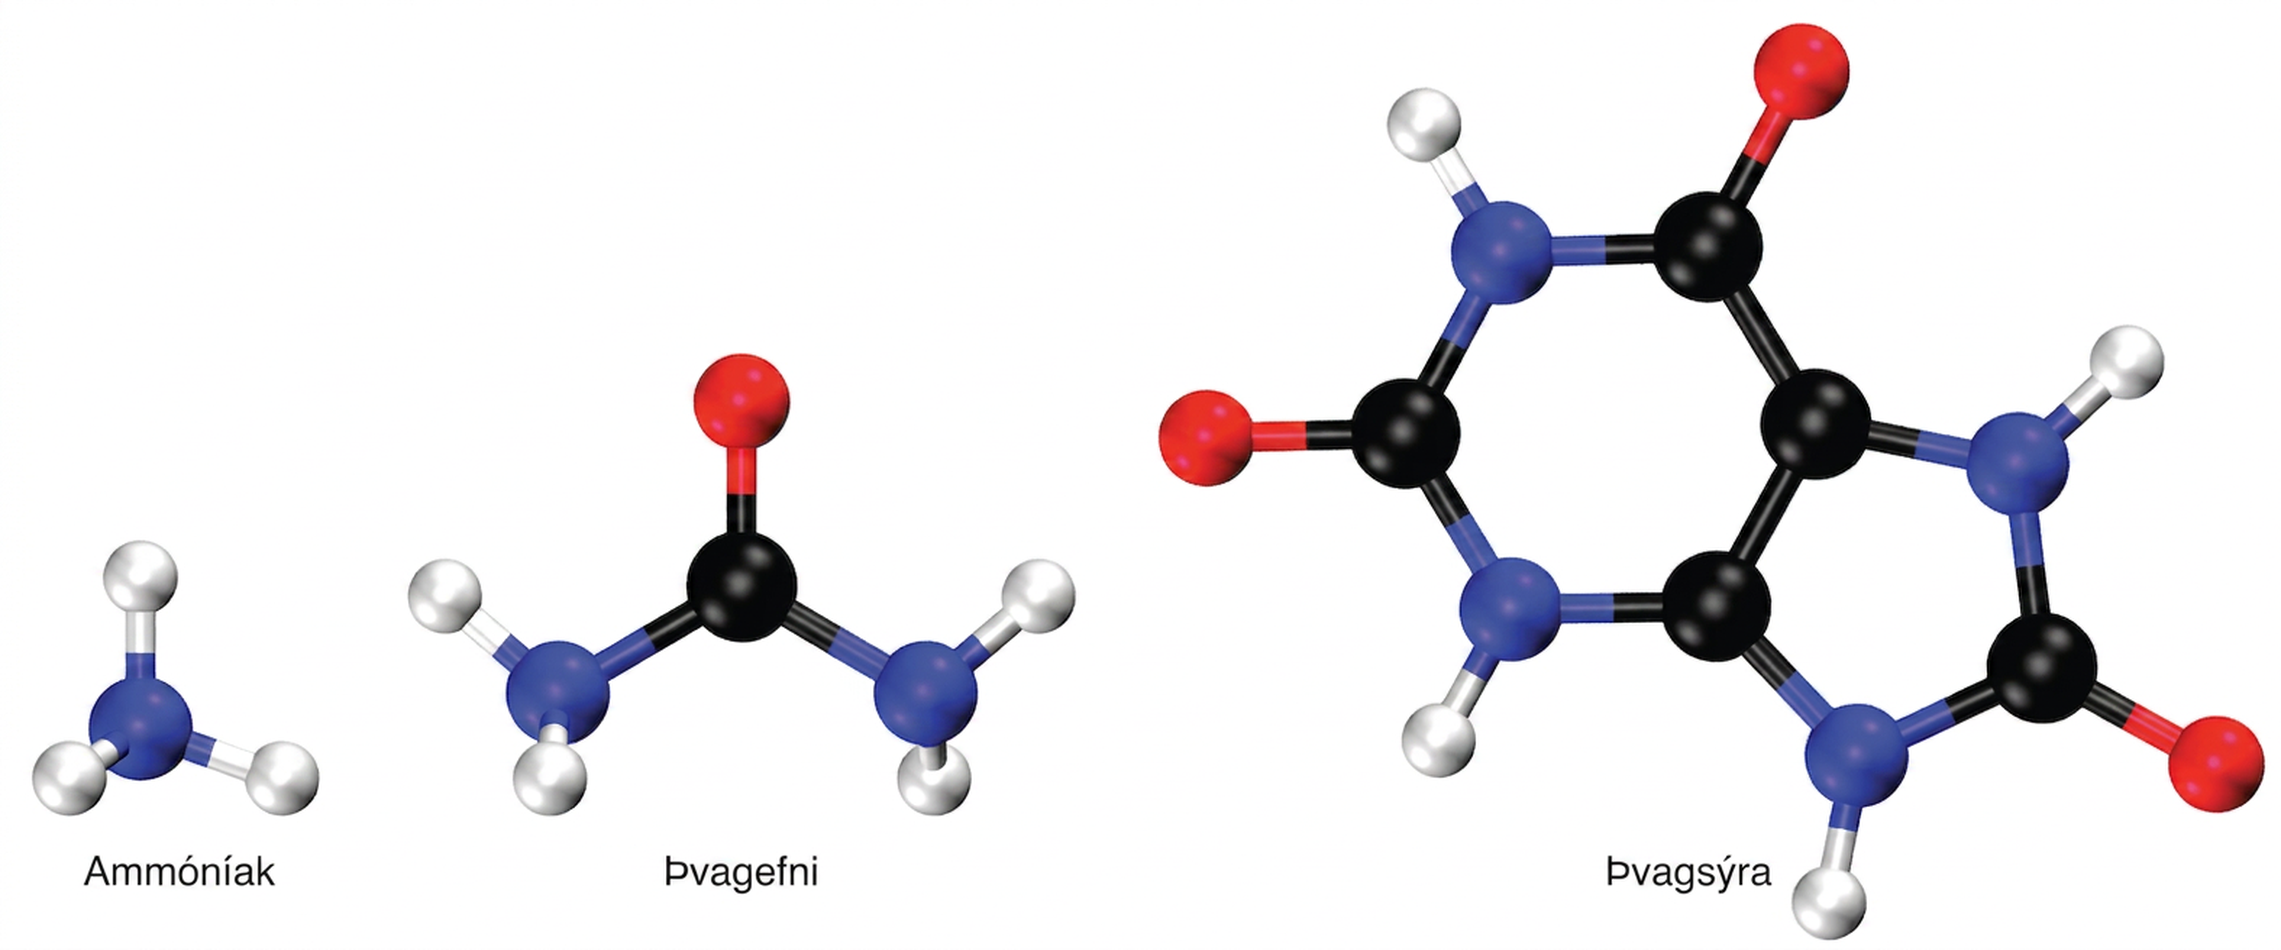
Við efnaskipti amínósýra eru amínóhópar (NH2) fluttir með amínfærslu og ammóníak (NH3) eða ammóníum getur losnað við amínósviptingu. Lifrin breytir meginhluta þessa köfnunarefnis í þvagefni með þvagefnishringnum, en nýrun skilja einnig út ammóníum og stýra því eftir sýru-basa-ástandi. Þvagsýra verður hins vegar aðallega til við niðurbrot púrína, ekki með beinni umbreytingu amínóhóps. Þvagefni er venjulega stærsti köfnunarefnisþáttur þvags, en magn þvagefnis, ammóníums og þvagsýru ræðst af mataræði, efnaskiptum, sýru-basa-ástandi og nýrnastarfsemi (mynd 25.22).
Útskilnaður lyfja og hormóna
Lyf og umbrotsefni þeirra geta borist í þvag með gaukulsíun, pípluseyti eða hvoru tveggja og geta jafnframt verið endurupptekin. Síun ræðst meðal annars af stærð, hleðslu og prótínbindingu; stórar sameindir eins og heparín og lyf sem eru sterklega bundin blóðvökvapróteinum síast lítið. Í nærpíplu flytja meðal annars lífrænar anjóna- og katjónaferjur mörg súr og basísk lyf úr blóði í pípluvökva, en ferjurnar eru ekki afmarkaðar við eitt lyf hver. Ójónaðar og fituleysanlegar sameindir geta verið enduruppteknar með óvirkum flutningi og hlutfall jónaðs lyfs ræðst af sýrustigi þvags og sýru-basa-eiginleikum þess. Úthreinsun lyfs er því afleiðing síunar, seytis og endurupptöku ásamt efnaskiptum, en ekki aðeins stærðar eða einfalds styrkfallanda.